3D 生物

把课本里的分子和细胞,放进三维里看。

生物化学

一张会流动的
代谢地图。

糖酵解、柠檬酸循环、脂肪酸 β-氧化和核苷酸合成,在乙酰-CoA 和5-磷酸核糖这些节点上连成一张网。图里每一颗分子都是真实结构:从 PubChem 取化学结构,按真实键长键角算出三维构象。

胞质溶胶 · 10 步反应

糖酵解

一分子葡萄糖分解成两分子丙酮酸。前 5 步是准备阶段,先要投入 2 个 ATP;后 5 步是产生 ATP 的贮能阶段。

2ATP
每分子葡萄糖净生成
2NADH
3-磷酸甘油醛脱氢酶生成
3
不可逆步骤
己糖激酶、磷酸果糖激酶-1、丙酮酸激酶催化的三步不可逆,三个酶一起调节糖酵解;其中磷酸果糖激酶-1 是限速酶,第 3 步是最重要的调控点。

朱圣庚《生物化学》下册 p.52–71;880 专题 17

线粒体基质 · 8 步反应

柠檬酸循环

丙酮酸进入线粒体,由丙酮酸脱氢酶复合体(3 种酶、5 种辅助因子)氧化脱羧成乙酰-CoA。乙酰-CoA 与草酰乙酸缩合成柠檬酸,转一圈又回到草酰乙酸。

3NADH
每轮
1FADH₂
琥珀酸脱氢酶生成
10ATP
每个乙酰-CoA 彻底氧化
每轮还生成 1 GTP、放出 2 CO₂。调节酶是柠檬酸合酶、异柠檬酸脱氢酶、α-酮戊二酸脱氢酶复合体;880 以异柠檬酸脱氢酶为最主要的限速酶。按 NADH 2.5、FADH₂ 1.5 计,一分子葡萄糖彻底氧化得 30 或 32 个 ATP。

朱圣庚《生物化学》下册 p.79–89、p.121;880 专题 18、19

线粒体基质 · 每轮 4 步

脂肪酸 β-氧化

软脂酰-CoA 每转一轮,经氧化、水合、再氧化、硫解四步,从羧基端切下 2 个碳,生成 1 分子乙酰-CoA。看它们一个个飞进柠檬酸循环。

7
轮 β-氧化
8
分子乙酰-CoA
106ATP
1 分子软脂酸净生成
每轮生成 1 FADH₂、1 NADH、1 乙酰-CoA。8×10 + 7×1.5 + 7×2.5 = 108,减去活化时消耗的 2 个高能磷酸键,净得 106。脂酰-CoA 靠肉碱穿梭进入线粒体,肉碱脂酰转移酶 Ⅰ是限速酶。

朱圣庚《生物化学》下册 p.216–223;880 专题 24

以 PRPP 为起点

核苷酸从头合成

戊糖磷酸途径来的 5-磷酸核糖,经磷酸核糖焦磷酸激酶活化成 PRPP。嘌呤是在 PRPP 上一个原子一个原子搭出来的,先得到 IMP,再转成 AMP、GMP;嘧啶则先合成环,再接到 PRPP 上。

天冬氨酸 N1 谷氨酰胺 N3、N9 甘氨酸 C4、C5、N7 N¹⁰-甲酰四氢叶酸 C2、C8 CO₂ C6
上面是图中 IMP 嘌呤环各原子的来源,放大的彩色原子就是它们。UMP 嘧啶环:N1、C4、C5、C6 来自天冬氨酸(橙),C2、N3 来自氨甲酰磷酸(紫)。人体嘌呤分解的终产物是尿酸。第一个嘧啶核苷酸,选择题按 UMP,880 另有填空按乳清苷酸。

朱圣庚《生物化学》下册 p.357–371;880 专题 27

细胞生物学

切开
生命的单位。

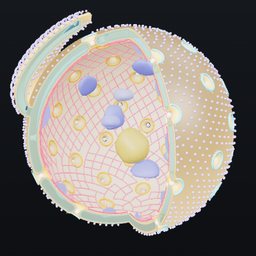
动物细胞、植物细胞、原核细胞和病毒,都按书上的尺寸搭建。动物细胞直径约 15 μm、细胞核约 6 μm;每个都切掉四分之一,看里面。

全貌

动物细胞

质膜包着胞质溶胶,里面是一套分工明确的细胞器:细胞核、内质网、高尔基体组成的内膜系统,产能的线粒体,负责降解的溶酶体,以及把它们撑起来、运起来的细胞骨架。

54%
胞质溶胶(肝细胞体积)
22%
线粒体
6%
细胞核

MBoC 第 7 版 表 12-1(肝细胞各区室体积占比)

遗传信息的仓库

细胞核

核被膜由内、外两层核膜构成,外核膜与糙面内质网相连、表面附着核糖体,内核膜内侧紧贴核纤层。两层膜在核孔复合体处相连;核仁没有膜包裹,分纤维中心、致密纤维组分、颗粒组分三区。

6μm
核直径
3000+
核孔复合体(哺乳动物细胞 3000–4000 个)
8
重对称的核孔

MBoC ch4 p190、ch12 p735–737;660 专题九

合成、加工、分选

内质网与高尔基体

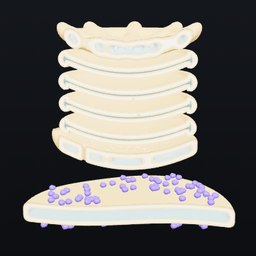
糙面内质网是附着核糖体的扁平膜囊,光面内质网是细管网络,两者的腔是连通的。新合成的蛋白经 COPⅡ 小泡运到高尔基体顺面,逐层加工,在反面网状结构(TGN)分选后送往各处,看黄色小泡。

4–8
个扁平膜囊一摞
60–80nm
COPⅡ 小泡直径
30nm
核糖体直径
标志酶:内质网是葡萄糖-6-磷酸酶,高尔基体是糖基转移酶。溶酶体酶在 TGN 靠 M6P 分选。

MBoC ch12 p698–699、ch13 p759–770;660 专题五

细胞的动力工厂

线粒体

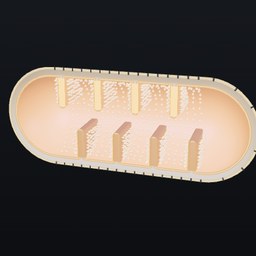
外膜、内膜、膜间隙、嵴和基质。内膜向内折成嵴,大大增加了面积。上面的柠檬酸循环和 β-氧化,就发生在这里的基质里。

0.3–1μm
直径
1.5–3μm
长度
4
个部位各有标志酶
标志酶:外膜单胺氧化酶,内膜细胞色素氧化酶,膜间隙腺苷酸激酶,基质苹果酸脱氢酶。内膜富含心磷脂、缺胆固醇。

660 专题七;MBoC ch14 p813–816

降解与氧化

溶酶体与过氧化物酶体

溶酶体里约 40 种酸性水解酶,靠膜上的 H⁺-ATP 酶把腔内维持在酸性。过氧化物酶体含过氧化氢酶和尿酸氧化酶,有的细胞里能看到尿酸氧化酶形成的类晶体核心(绿色小泡里的深色方块)。

≈5
溶酶体腔内 pH
0.2–0.5μm
溶酶体直径
-SKL
过氧化物酶体基质蛋白 C 端信号
标志酶:溶酶体酸性磷酸酶,过氧化物酶体过氧化氢酶。

660 专题五;MBoC ch12 p723–724、ch13 p798–799

支架与轨道

细胞骨架与中心体

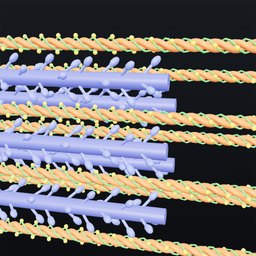
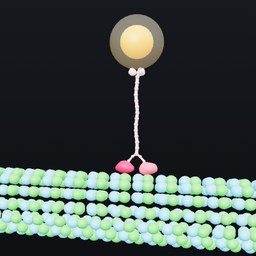
微管从中心体向外放射,是小泡运输的轨道;微丝在质膜下织成皮层。中心体由一对互相垂直的中心粒和中心粒外周物质组成,每个中心粒由 9 组三联体微管围成,中央没有微管。

24nm
微管外径,13 根原纤丝
7nm
微丝直径
10nm
中间丝直径

660 专题八;MBoC ch16 p950、p987–993

细胞壁 · 大液泡 · 叶绿体

植物细胞

质膜外面还有一层细胞壁:最外的胞间层富含果胶,把相邻细胞粘在一起;里面是由纤维素微原纤维、交联聚糖和果胶构成的初生壁。中央液泡把细胞质挤成贴壁的一薄层,叶绿体就排在这一层里缓缓环流。相邻细胞靠胞间连丝相通。

30–90%
中央液泡占细胞体积
20–40nm
胞间连丝直径
0
中心体(高等植物没有)
胞间连丝中间的连丝管与光面内质网相连。660:植物细胞没有溶酶体,类似溶酶体的功能主要由液泡承担(MBoC 则直接把液泡看作一种溶酶体)。

MBoC ch13 p800、ch16 p993、ch19 p1124、p1155–1157;660 专题五、十二、十六

光合作用的场所

叶绿体

双层被膜包着基质。扁平的类囊体一摞摞堆成基粒,基粒之间由不堆叠的类囊体(基质片层)连起来,所有类囊体腔彼此连通。光反应在类囊体膜上,暗反应在基质中。

20–40
玉米叶肉细胞里的叶绿体数
70S
叶绿体核糖体(近似)
70–200kb
叶绿体 DNA,环状、无组蛋白
叶绿体是半自主性细胞器,受核基因组和自身基因组两套遗传系统控制,起源于蓝细菌。光系统 Ⅱ 多在基粒类囊体,光系统 Ⅰ 多在基质类囊体。

MBoC ch14 p815 表 14-1、p844、p852、p862;660 专题七、十

没有核膜的细胞

原核细胞 · 大肠杆菌

遗传物质是一个环状 DNA,盘绕在细胞中央的拟核区,没有核膜包裹;没有内膜系统,细胞质里是大量 70S 核糖体。革兰氏阴性菌的包被从外到内是外膜(外叶是脂多糖)、周质中的肽聚糖、内膜(质膜)。表面的鞭毛靠基部的旋转马达转动。

4.6Mb
基因组(K-12 株,约 4300 种蛋白)
70S
= 50S + 30S
30min
分裂一次
最小的细胞是支原体:生殖道支原体的基因组只有 580,070 bp、525 个基因。菌毛可长达几微米,用于黏附和交换遗传物质。

MBoC ch1 p10–36、ch5 p253、ch6 p366、ch11 p650、ch16 p1005、ch23 p1316

剖开包被

细胞壁与鞭毛马达

革兰氏阴性菌有两层膜:外膜的外叶是脂多糖,内叶是磷脂,膜上有孔蛋白;两层膜之间的周质里是一层较薄的肽聚糖,经脂蛋白连在外膜上。革兰氏阳性菌只有一层膜,肽聚糖层很厚,含磷壁酸。

2
层膜(革兰氏阴性菌)
1
层膜 + 厚肽聚糖(革兰氏阳性菌)
H⁺
驱动鞭毛马达旋转
肽聚糖和脂多糖是细菌特有的成分。鞭毛是由鞭毛蛋白组成的螺旋丝,基部嵌在包被里的马达靠质子流旋转(有的细菌用 Na⁺),像螺旋桨一样推着菌体前进。

MBoC ch11 p650 图 11-17、ch14 p842、ch16 p1005、ch23 p1316

非细胞形态

病毒 · T4 噬菌体

病毒没有细胞结构,由核酸和蛋白质衣壳构成,只能在宿主细胞里复制。T4 的头部是拉长的二十面体衣壳,装着双链 DNA;尾部像注射器:尾丝抓住大肠杆菌,尾鞘收缩,中间的尾管刺穿外膜,DNA 注入。

20–200nm
大部分病毒的大小
1
种核酸:DNA 或 RNA
48
个基因参与 T4 装配
衣壳有二十面体对称(脊灰病毒、疱疹病毒)和螺旋对称(流感、麻疹病毒)等形式。有包膜的病毒以出芽方式释放,包膜来自宿主质膜;无包膜病毒多靠裂解宿主细胞释放。类病毒是感染植物的裸露 RNA,朊病毒是错误折叠的蛋白质。

MBoC ch1 p34、ch3 p138、ch6 p390、ch8 p523、ch23 p1323–1325;660 专题二

全部模型

每个模型都能转动、缩放,配一步一步的讲解和原题答案。
生物化学16 个模型
20 种氨基酸:结构与基团
专题 2 · 3D 分子、基团着色、pH 7 带电形式
蛋白质的三维结构与折叠
第 2–3 章 · 肽平面、α/β 二级结构、超二级模体、作用力、纤维状蛋白、变性复性与分子伴侣
影响 α 螺旋稳定性的 5 个因素
专题 3 · 蛋白质的三维结构
α 螺旋里为什么很少有 Gly 和 Pro
专题 3 · 蛋白质的三维结构
蛋白质功能与分离纯化
第 4–5 章 · Mb/Hb 协同变构、Bohr/BPG 与镰变、免疫球蛋白、ELISA/WB、层析与电泳
血红蛋白:氧合曲线与波尔效应
专题 4 · 蛋白质结构与功能的关系
酶通论与催化作用
第 6 章 · 降低活化能、全酶与辅因子、EC 六大类、锁钥与诱导契合、核酶与抗体酶
酶促反应动力学
第 7 章 · 稳态米氏方程、Kₘ 与 kcat/Kₘ、双底物乒乓机制、可逆与不可逆抑制、温度与 pH
酶的作用机制与调节
第 8 章 · 活性部位与高效 4 因素、溶菌酶、丝氨酸蛋白酶、别构调节与 ATCase、可逆磷酸化级联与同工酶
糖类的立体结构与功能
第 9 章 · 单糖成环与变旋、还原/非还原二糖、直/支链淀粉与纤维素、细菌肽聚糖与糖胺聚糖、糖缀合物与 ABO 血型
脂质与生物膜
第 10 章 · 必需脂肪酸与三酰甘油、甘油磷脂与鞘脂、胆固醇与血浆脂蛋白、流动镶嵌模型与跨膜运输
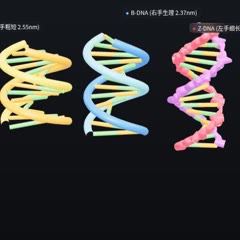
核酸的结构与功能
第 11 章 · 碱基与核苷酸、Watson-Crick 双螺旋与 Chargaff 规律、A/B/Z 构象、超螺旋拓扑与核小体、mRNA 与 tRNA
核酸的理化性质与研究方法
第 12 章 · 酸碱/酶水解与 260 nm 紫外吸收、热变性 Tm 与复性杂交、抽提超离与电泳、PCR 循环、Sanger 测序
维生素与辅酶
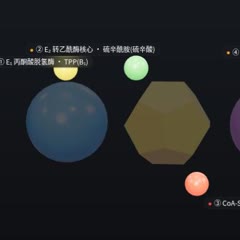
第 13 章 · 脂溶性维生素(A/D/E/K)、FMN/FAD 与 NAD(P)⁺ 递氢、TPP/CoA/PLP/生物素、丙酮酸脱氢酶系五辅酶、四氢叶酸一碳单位与 B₁₂
激素与信号转导
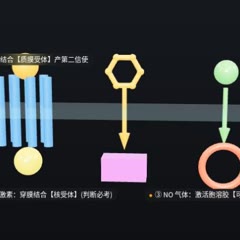
第 14 章 · 分泌方式与三类机制、肾上腺素—Gs—cAMP—PKA 促糖原分解与脱敏、Gq—PLC(IP₃/DAG) 与钙调蛋白、胰岛素 RTK—IRS-1 双分支、核受体
DNA 的重组
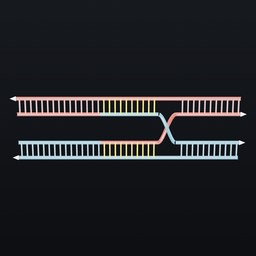
专题 31 · 同源重组、特异位点重组、转座
细胞生物学17 个模型
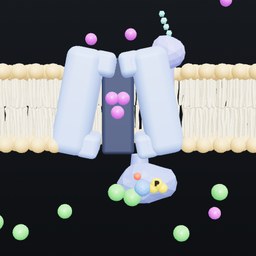
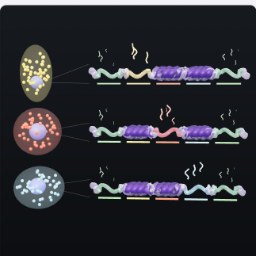
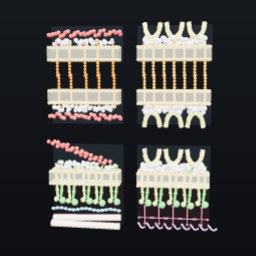
细胞质膜
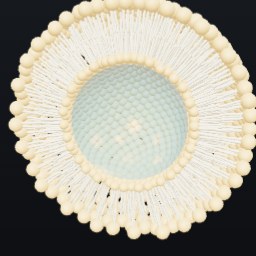
专题三 · 脂双层、膜蛋白、流动性与不对称性、膜骨架、脂筏
物质的跨膜运输
专题四 · 扩散、通道与载体、钠钾泵、协同转运、胞吞胞吐
细胞质基质与内膜系统
专题五 · 泛素与伴侣、内质网、高尔基体、溶酶体与自噬、过氧化物酶体
蛋白质分选与膜泡运输
专题六 · 信号肽与 SRP、膜蛋白拓扑、线粒体与叶绿体输入、COPⅡ/COPⅠ、Rab 与 SNARE
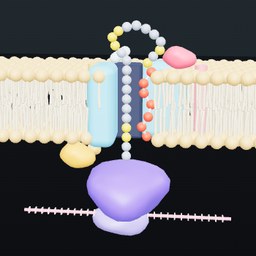
线粒体与叶绿体
专题七 · 嵴与基粒、电子传递链、ATP 合酶旋转、类囊体光反应、内共生
微丝与肌肉收缩
专题八(上)· 组装与踏车、结合蛋白与药物、片足与微绒毛、肌节滑动与横桥循环
微管、分子马达与中间丝
专题八(下)· 13 根原纤维、动态不稳定性、中心体、驱动蛋白、9+2 纤毛、纺锤体、中间丝
核被膜、核孔与核仁
专题九(上)· 核被膜与核纤层、核孔复合体、NLS 与 Ran 循环、核仁与 rRNA
染色质与染色体
专题九(下)· 核小体、多级螺旋与放射环、常/异染色质与表观调控、动粒与端粒、多线与灯刷染色体
核糖体与蛋白质合成
专题十 · 70S/80S 与七个位点、起始、延伸循环、终止、多聚核糖体
细胞信号转导
专题十一 · 分子开关、GPCR 与 G 蛋白、cAMP 与 IP₃/Ca²⁺、NO、RTK-Ras、JAK-STAT
细胞周期与细胞分裂
专题十二 · 周期与检查点、有丝分裂、黏连蛋白与分离酶、胞质分裂、减数分裂与联会复合体
细胞增殖调控与癌细胞
专题十三 · MPF 的发现、cyclin-CDK、Cdk1 激活、APC、Rb–E2F、p53、癌基因与抑癌基因
细胞分化与干细胞
专题十四 · 选择性表达、组合调控、分化潜能、核移植、诱导与决定子、干细胞与巢、iPS
细胞衰老与程序性死亡
专题十五 · Hayflick 与端粒、凋亡 vs 坏死、检测、caspase、外源与内源途径、Bcl-2、焦亡与植物 PCD
细胞连接、黏着与细胞外基质
专题十六 · 紧密连接、四种锚定连接、间隙连接与胞间连丝、黏着分子、整联蛋白、胶原与蛋白聚糖、基膜与细胞壁
细胞生物学研究方法
专题二 · 显微镜、电镜制样、示踪、分子互作等